Jak komórka kopiuje trzy miliardy liter DNA i prawie się nie myli?
Trzy miliardy par zasad w pojedynczym zestawie chromosomów — a każdą z nich trzeba skopiować przed podziałem komórki. Jak to możliwe, że proces ten przebiega szybko i niemal bezbłędnie? Zobacz, jak działają widełki replikacyjne, czym różnią się nić wiodąca i opóźniona oraz w jaki sposób polimeraza DNA i systemy naprawcze wychwytują powstające pomyłki.
Replikacja DNA
W jednej haploidalnej kopii ludzkiego genomu znajduje się około trzech miliardów par zasad. Przed podziałem komórka musi odtworzyć cały ten zapis, zachowując właściwą kolejność nukleotydów.
W komórce somatycznej znajdują się dwa zestawy chromosomów – jeden odziedziczony od matki, a drugi od ojca. W praktyce przed podziałem kopiowanych jest więc około sześciu miliardów par zasad. Mimo tak ogromnej skali proces przebiega szybko i niezwykle dokładnie.
Kopiowanie DNA nazywamy replikacją. Nie polega ono na jednoczesnym odczytaniu całej cząsteczki. W wielu miejscach DNA powstają niewielkie zespoły enzymów, które rozplatają podwójną helisę, dobierają komplementarne nukleotydy, łączą je w nowe nici i kontrolują poprawność wykonanej kopii.
Czym jest replikacja DNA?
Replikacja DNA to proces prowadzący do powstania dwóch cząsteczek DNA na podstawie jednej cząsteczki wyjściowej.
Zachodzi przed podziałem komórki, podczas fazy S interfazy. Dzięki niej każda komórka potomna może otrzymać pełny zestaw informacji genetycznej.
Replikacja obejmuje trzy główne etapy:
- inicjację – rozpoczęcie procesu i rozplecenie DNA,
- elongację – wydłużanie nowych nici,
- terminację – zakończenie kopiowania i uporządkowanie powstałych cząsteczek.
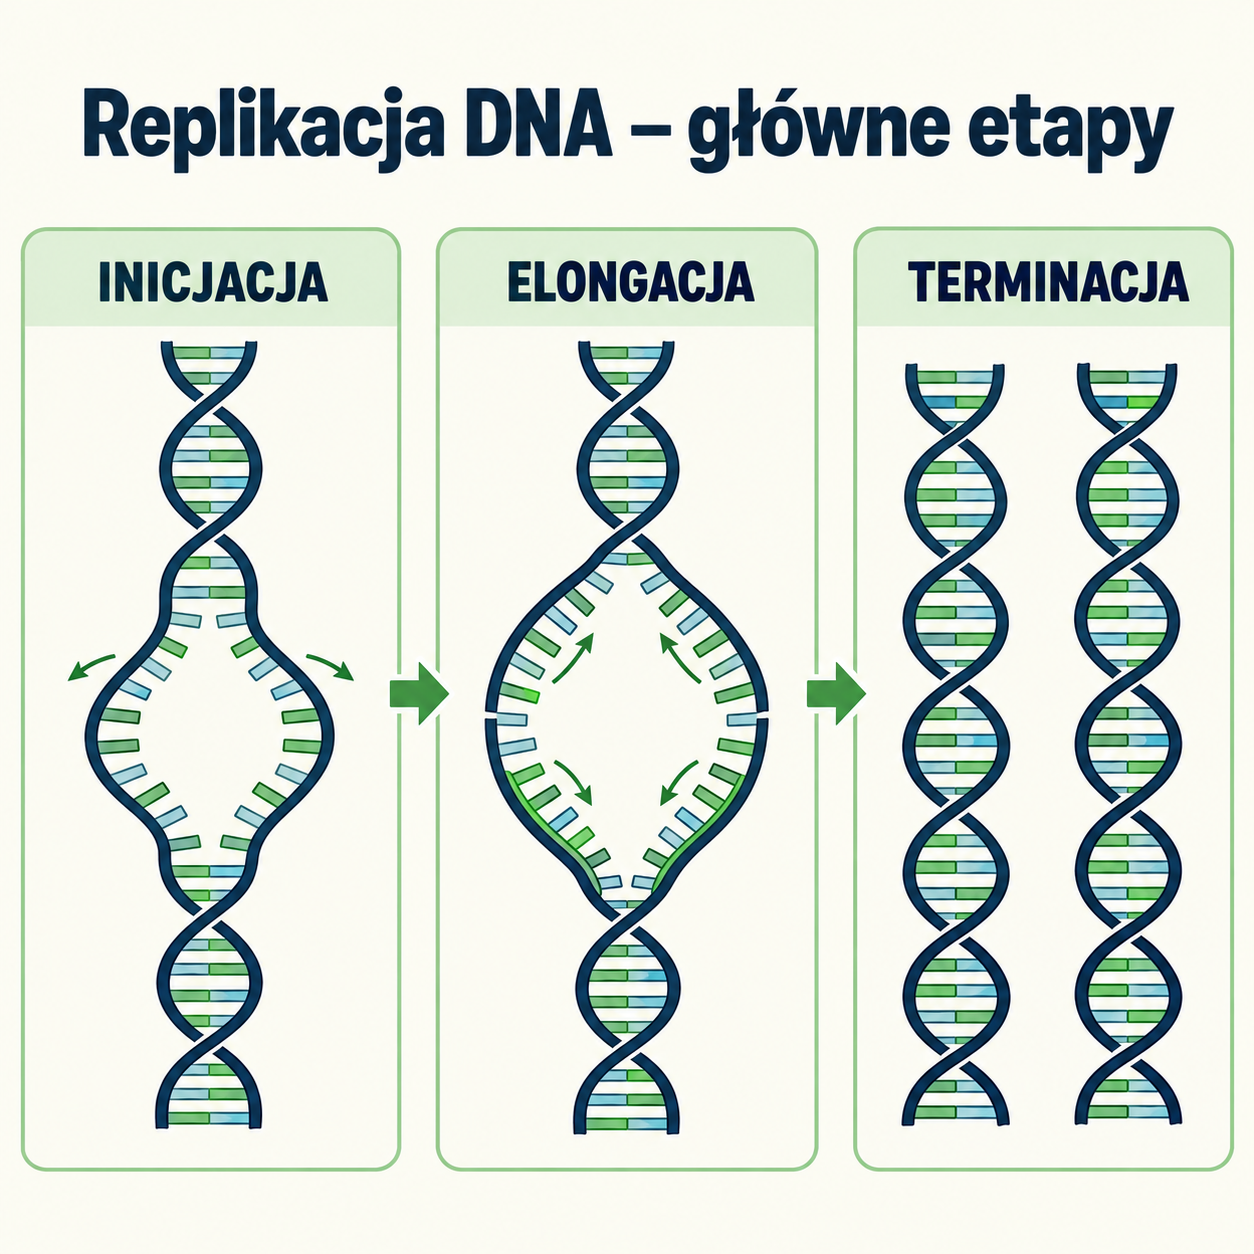
Proces nie jest wykonywany przez pojedynczy enzym. Uczestniczy w nim złożony zespół białek tworzących aparat replikacyjny.
Dlaczego każda nić może być matrycą?
Dwie nici DNA są komplementarne. Adenina w jednej nici łączy się z tyminą w drugiej, natomiast guanina – z cytozyną.
Jeśli znamy sekwencję jednej nici, możemy na jej podstawie odtworzyć sekwencję drugiej. Przykładowo:
5′–A T G C C A–3′
3′–T A C G G T–5′
Po rozdzieleniu nici każda z nich może posłużyć jako matryca do syntezy nowej nici komplementarnej.
To właśnie zasada komplementarności umożliwia wierne kopiowanie informacji genetycznej.
Replikacja jest semikonserwatywna
Każda cząsteczka DNA powstała po replikacji zawiera:
- jedną nić pochodzącą z cząsteczki wyjściowej,
- jedną nić zsyntetyzowaną od nowa.
Taki sposób kopiowania nazywamy replikacją semikonserwatywną, czyli półzachowawczą.
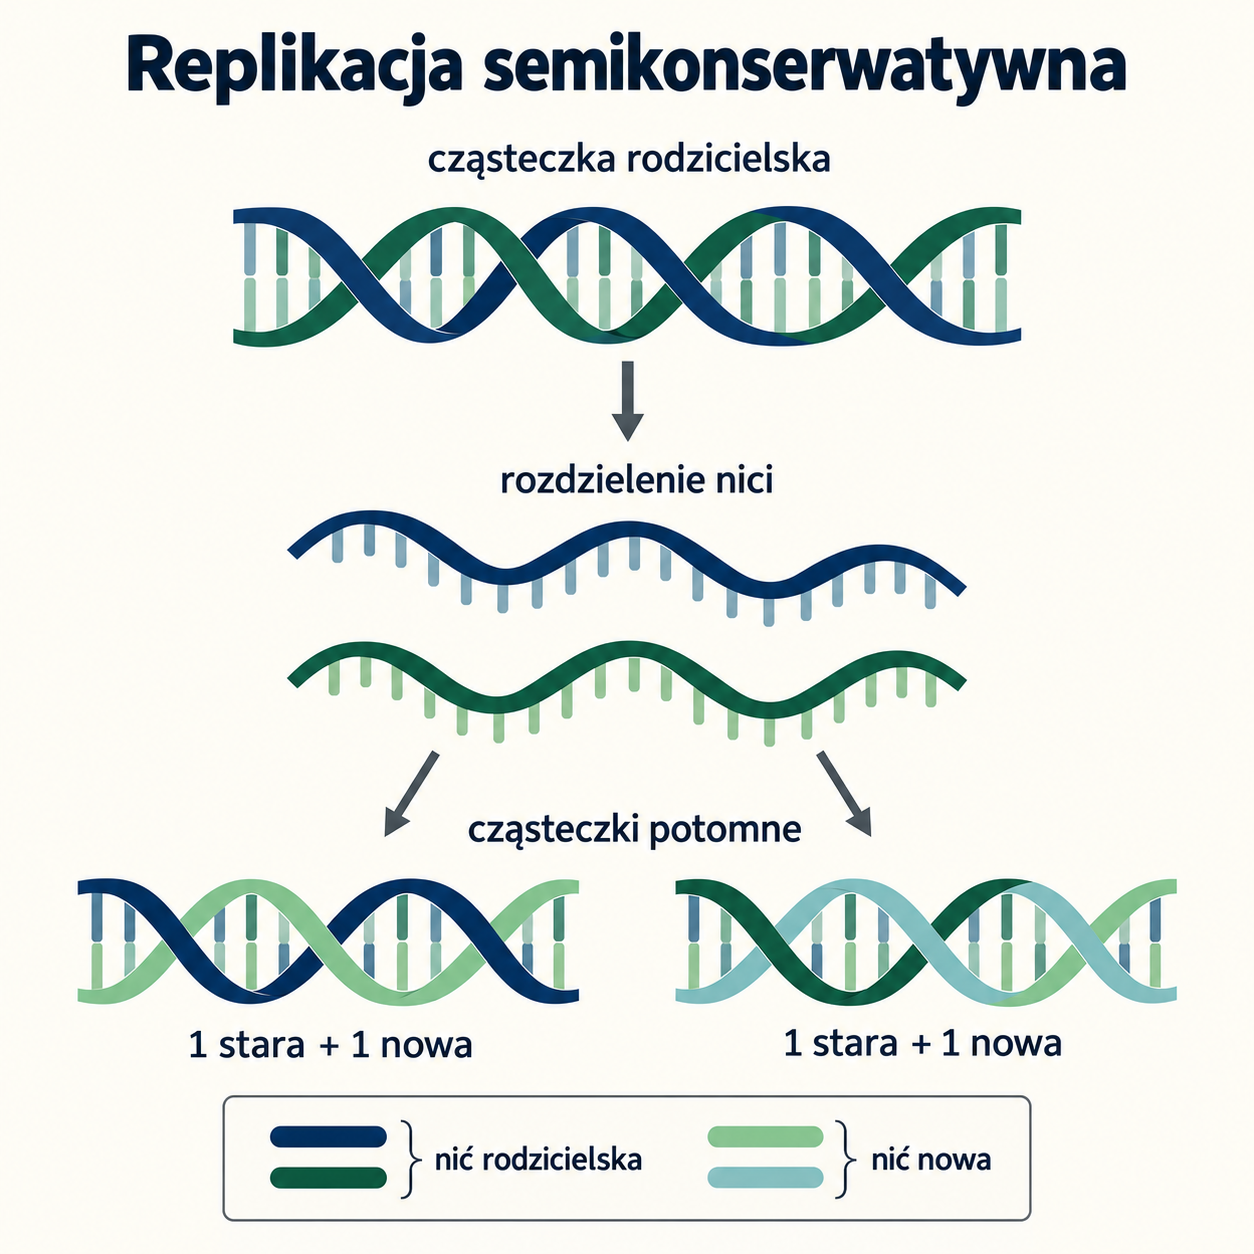
Komórka nie zachowuje jednej całkowicie starej cząsteczki i nie buduje obok niej całkowicie nowej. Rozdziela dwie istniejące nici i do każdej z nich dobudowuje nić komplementarną.
W efekcie z jednej podwójnej helisy powstają dwie, z których każda jest połączeniem jednej nici starej i jednej nowej.
Gdzie rozpoczyna się kopiowanie DNA?
Replikacja rozpoczyna się w określonych miejscach cząsteczki nazywanych miejscami inicjacji replikacji.
Do DNA przyłączają się białka rozpoznające te sekwencje. Następnie powstaje kompleks umożliwiający lokalne rozdzielenie nici i rozpoczęcie syntezy.
Wokół miejsca inicjacji tworzy się oczko replikacyjne. Na jego obu końcach znajdują się widełki replikacyjne – obszary, w których DNA jest rozplatany i kopiowany.
Replikacja przebiega dwukierunkowo. Dwa zespoły enzymów przesuwają się od miejsca inicjacji w przeciwnych kierunkach, powiększając oczko replikacyjne.
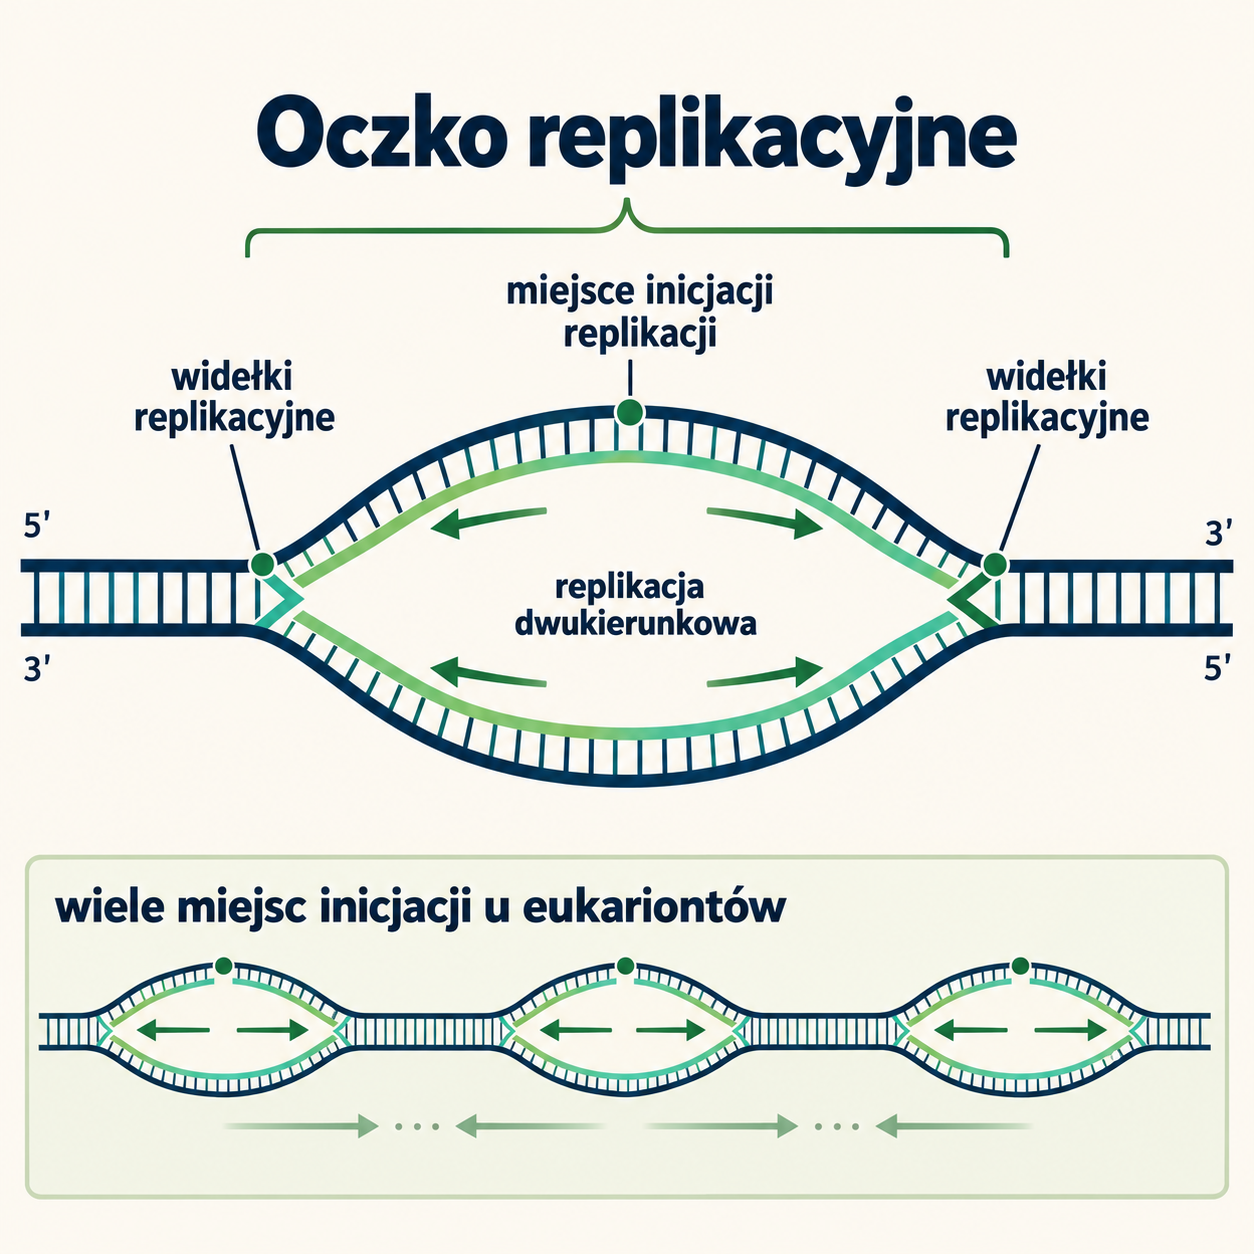
Eukariotyczne chromosomy są bardzo długie, dlatego mają liczne miejsca inicjacji. Gdyby każdy chromosom był kopiowany od jednego końca do drugiego przez pojedynczy zespół enzymów, proces trwałby zdecydowanie zbyt długo.
W wielu miejscach jednocześnie powstają więc oczka replikacyjne, które stopniowo się powiększają i ostatecznie łączą.
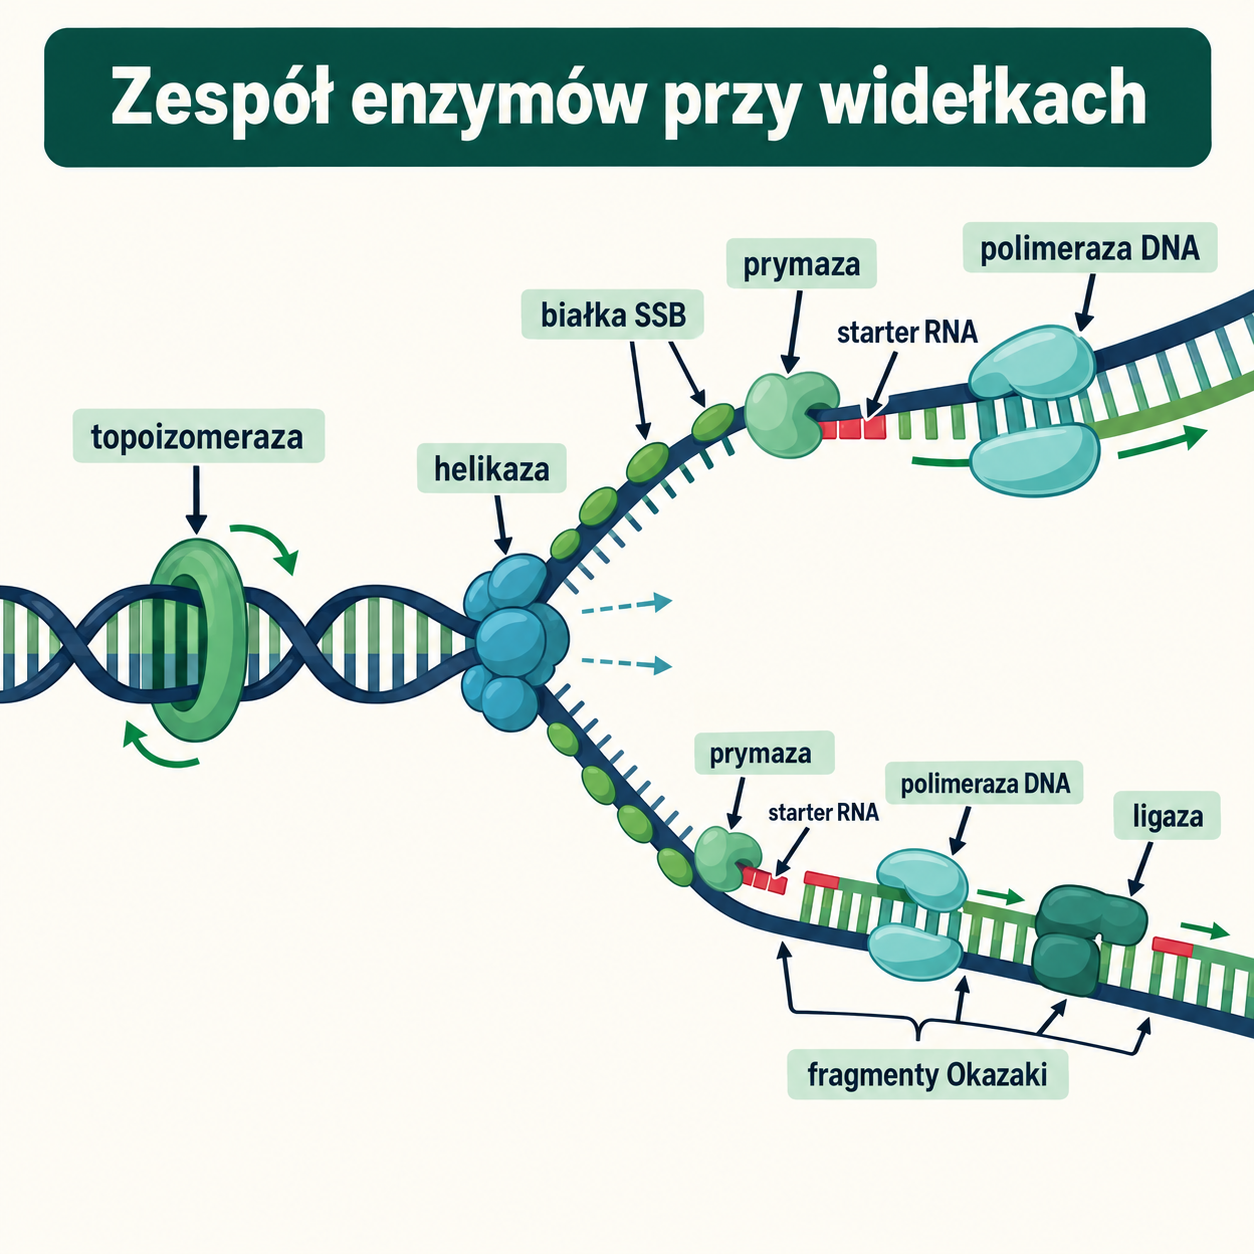
Helikaza – enzym otwierający podwójną helisę
Pierwszym zadaniem aparatu replikacyjnego jest rozdzielenie obu nici DNA.
Wykonuje je helikaza. Enzym ten rozrywa wiązania wodorowe pomiędzy komplementarnymi zasadami i rozplata podwójną helisę.
Nie przecina przy tym szkieletu cukrowo-fosforanowego. Wiązania fosfodiestrowe łączące nukleotydy w obrębie pojedynczej nici pozostają zachowane.
Działanie helikazy prowadzi do powstania widełek replikacyjnych przypominających kształtem literę Y.
Co chroni rozdzielone nici?
Rozdzielone nici DNA mają tendencję do ponownego łączenia się. Mogą również tworzyć nieprawidłowe struktury wynikające z komplementarności krótkich fragmentów tej samej nici.
Zapobiegają temu białka wiążące jednoniciowy DNA. U bakterii są nazywane białkami SSB, natomiast u eukariontów podobną funkcję pełni kompleks RPA.
Białka te:
- stabilizują rozdzielone nici,
- zapobiegają ich ponownemu połączeniu,
- chronią jednoniciowy DNA,
- utrzymują matrycę w postaci dostępnej dla kolejnych enzymów.
Nie odczytują informacji genetycznej i nie dobierają nukleotydów. Przygotowują natomiast odpowiednie warunki do syntezy nowych nici.
Topoizomeraza – rozwiązanie problemu skręcenia DNA
Rozplatanie podwójnej helisy w jednym miejscu powoduje narastanie naprężeń w dalszej części cząsteczki. DNA zaczyna się coraz silniej skręcać przed widełkami replikacyjnymi.
Problem ten rozwiązują topoizomerazy.
Enzymy te czasowo przecinają jedną albo obie nici DNA, umożliwiają zmianę stopnia skręcenia cząsteczki, a następnie ponownie łączą jej szkielet cukrowo-fosforanowy.
Dzięki temu widełki replikacyjne mogą przesuwać się bez nadmiernego naprężania i plątania DNA.
Topoizomeraza rzeczywiście może więc przecinać DNA, ale robi to w sposób kontrolowany i krótkotrwały.
Polimeraza DNA nie potrafi rozpocząć od zera
Najważniejszym enzymem syntetyzującym nową nić jest polimeraza DNA. Dobiera ona nukleotydy komplementarne do nici matrycowej i tworzy pomiędzy nimi wiązania fosfodiestrowe.
Polimeraza DNA nie może jednak rozpocząć syntezy nowej nici bez żadnego punktu wyjścia. Potrzebuje istniejącego końca 3′ z wolną grupą hydroksylową.
Punkt startowy zapewnia starter, nazywany także primerem.
Starter jest krótkim odcinkiem RNA syntetyzowanym przez enzym zwany prymazą. Po jego utworzeniu polimeraza DNA może rozpocząć dołączanie kolejnych nukleotydów.
Starter RNA zostaje później usunięty, a powstała luka uzupełniona DNA.
Dlaczego DNA powstaje tylko w kierunku 5′ → 3′?
Każda nić DNA ma określony kierunek wynikający z budowy nukleotydów. Jej końce oznaczamy jako 5′ oraz 3′.
Polimeraza DNA może dołączyć nowy nukleotyd wyłącznie do wolnej grupy 3′-OH rosnącej nici. Nowa nić jest więc zawsze syntetyzowana w kierunku:
5′ → 3′
Nić matrycowa jest natomiast odczytywana w kierunku:
3′ → 5′
Dwie nici DNA są antyrównoległe, dlatego przebieg replikacji na każdej z nich wygląda inaczej.
To ograniczenie chemiczne prowadzi do powstania nici wiodącej i nici opóźnionej.
Nić wiodąca – synteza ciągła
Na jednej z nici matrycowych polimeraza może przesuwać się w tym samym kierunku, w którym otwierają się widełki replikacyjne.
Nowa nić jest wtedy syntetyzowana w sposób ciągły. Nazywamy ją nicią wiodącą.
Do jej syntezy potrzebny jest jeden starter dla danego odcinka rozpoczynającego się w miejscu inicjacji. Następnie polimeraza DNA może stopniowo wydłużać nić wraz z przesuwaniem się widełek replikacyjnych.
Określenia „wiodąca” i „opóźniona” dotyczą sposobu syntezy nowych nici, a nie tego, która nić DNA jest ważniejsza.
Nić opóźniona – synteza fragmentami
Na drugiej nici matrycowej kierunek pracy polimerazy jest przeciwny do kierunku przesuwania się widełek replikacyjnych.
Ponieważ polimeraza nadal może syntetyzować DNA tylko w kierunku 5′ → 3′, nowa nić nie może powstawać ciągle w stronę otwierających się widełek.
Jest więc budowana krótkimi odcinkami nazywanymi fragmentami Okazaki.
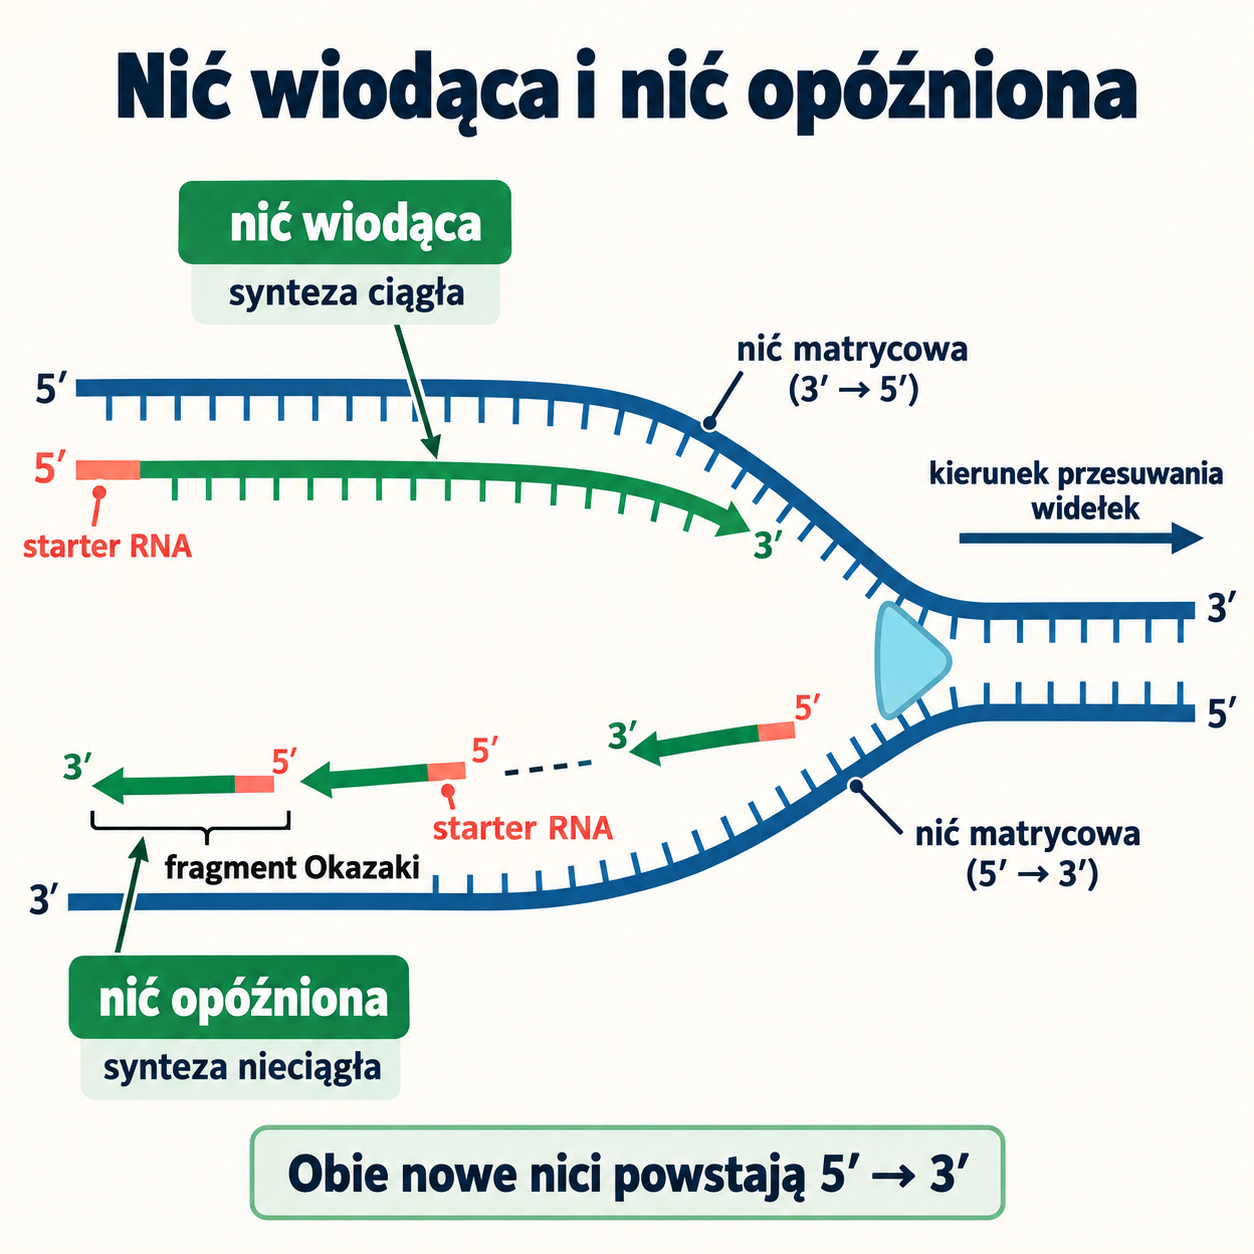
Za każdym razem, gdy helikaza odsłoni kolejny fragment matrycy:
- prymaza tworzy nowy starter RNA,
- polimeraza DNA wydłuża fragment w kierunku 5′ → 3′,
- starter zostaje usunięty,
- luka zostaje uzupełniona DNA,
- sąsiednie fragmenty zostają połączone.
Nić powstającą w ten sposób nazywamy nicią opóźnioną.
Jej synteza również zachodzi w kierunku 5′ → 3′. Określenie „opóźniona” wynika z tego, że jest tworzona etapami.
Ligaza DNA – enzym łączący fragmenty
Po usunięciu starterów i zastąpieniu ich DNA pomiędzy sąsiednimi fragmentami pozostają przerwy w szkielecie cukrowo-fosforanowym.
Usuwa je ligaza DNA.
Enzym ten tworzy brakujące wiązania fosfodiestrowe, łącząc fragmenty Okazaki w jedną ciągłą nić.
Ligaza:
- nie dobiera komplementarnych nukleotydów,
- nie rozplata podwójnej helisy,
- nie syntetyzuje starterów,
- zamyka przerwy pomiędzy już utworzonymi fragmentami DNA.
Można porównać ją do enzymatycznego „kleju”, ale należy pamiętać, że jej działanie polega na tworzeniu konkretnych wiązań chemicznych.
Replikacja krok po kroku
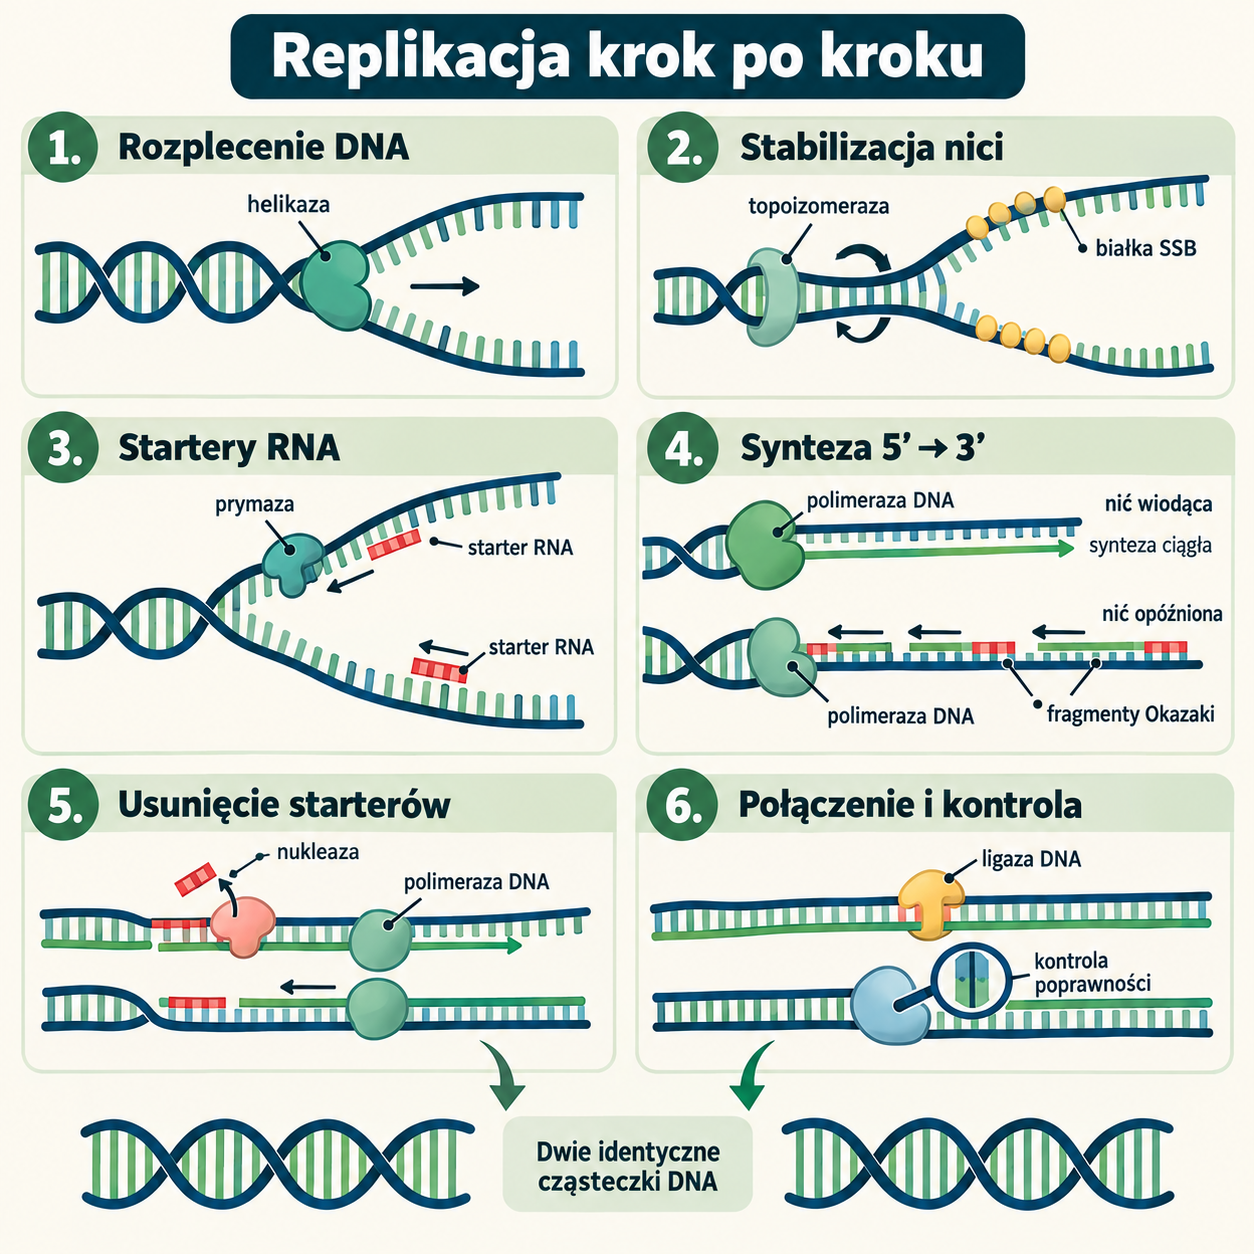
W uproszczeniu proces replikacji przebiega następująco:
- Białka inicjatorowe rozpoznają miejsce rozpoczęcia replikacji.
- Helikaza rozplata podwójną helisę.
- Białka wiążące jednoniciowy DNA stabilizują rozdzielone nici.
- Topoizomeraza usuwa naprężenia powstające przed widełkami.
- Prymaza syntetyzuje startery RNA.
- Polimeraza DNA dobudowuje komplementarne nukleotydy w kierunku 5′ → 3′.
- Nić wiodąca powstaje ciągle.
- Nić opóźniona powstaje w postaci fragmentów Okazaki.
- Startery RNA są usuwane, a luki uzupełniane DNA.
- Ligaza łączy fragmenty nici opóźnionej.
- Enzymy sprawdzają poprawność powstałej kopii.
- Dwa aparaty replikacyjne spotykają się lub docierają do końca kopiowanego obszaru.
Efektem są dwie cząsteczki DNA zawierające taką samą informację genetyczną jak cząsteczka wyjściowa – o ile podczas kopiowania nie powstała mutacja.
Jak polimeraza rozpoznaje właściwy nukleotyd?
O prawidłowym doborze nukleotydów decyduje zasada komplementarności:
- naprzeciw adeniny powinno znaleźć się T,
- naprzeciw tyminy – A,
- naprzeciw guaniny – C,
- naprzeciw cytozyny – G.
Prawidłowe pary zasad mają odpowiedni układ wiązań wodorowych oraz pasują do przestrzennej budowy centrum aktywnego polimerazy.
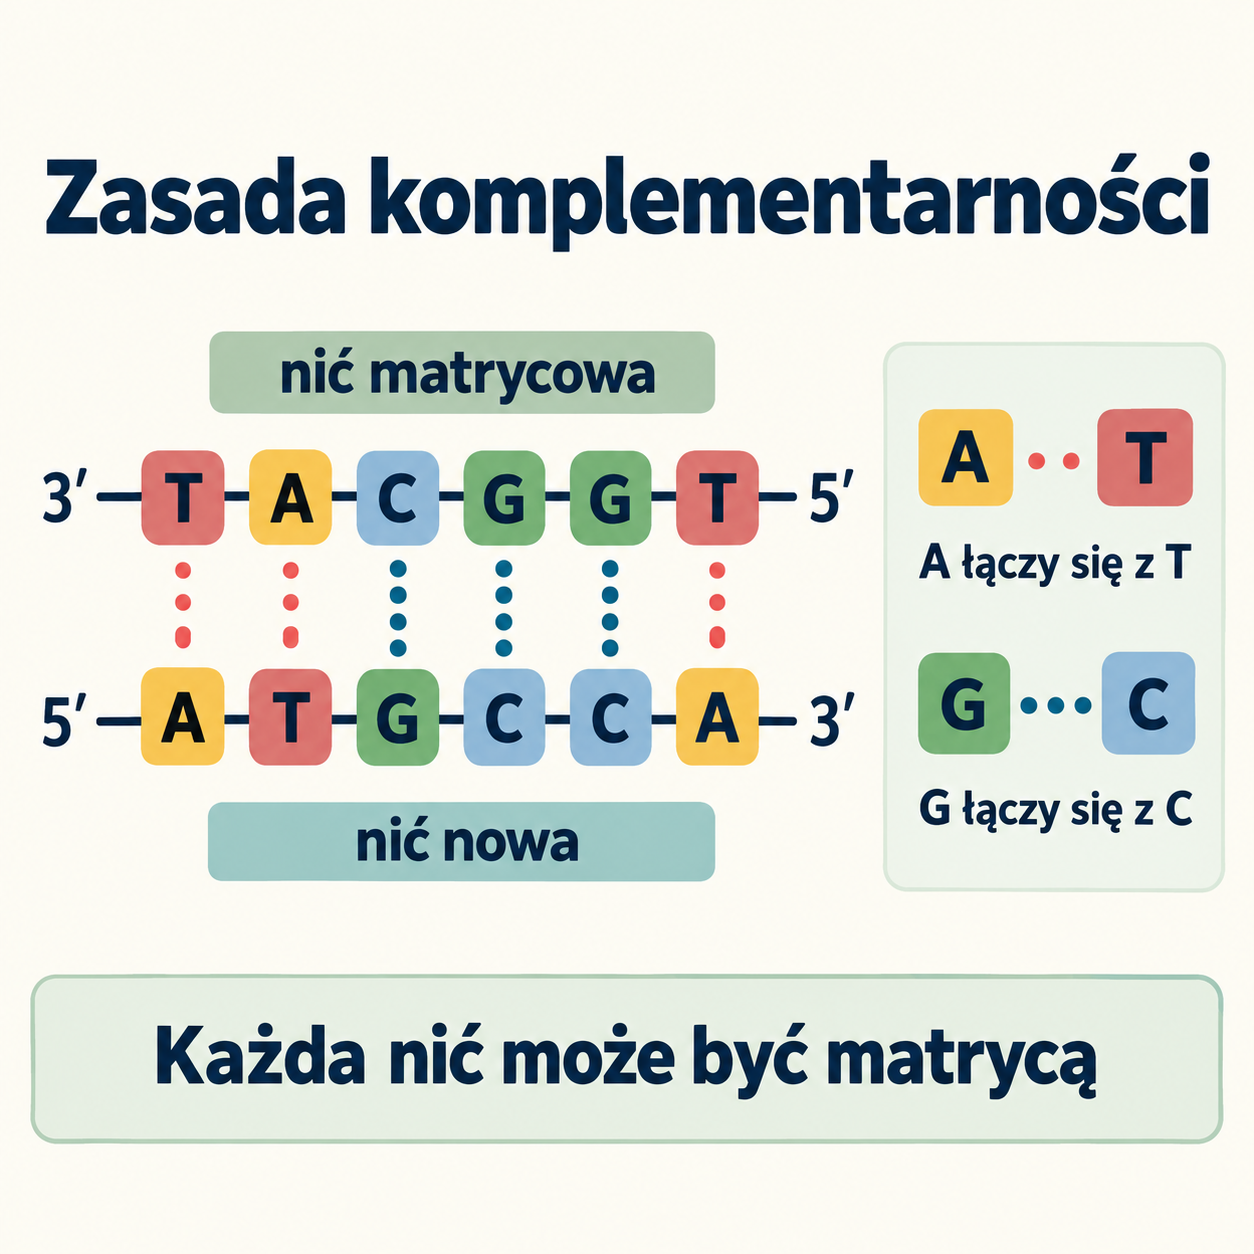
Enzym nie wybiera więc nukleotydów w sposób świadomy. Jego budowa chemiczna i przestrzenna sprzyja włączaniu nukleotydu właściwie dopasowanego do matrycy.
Czasami dochodzi jednak do pomyłki. Wtedy uruchamiane są kolejne poziomy kontroli.
Korekta w czasie kopiowania
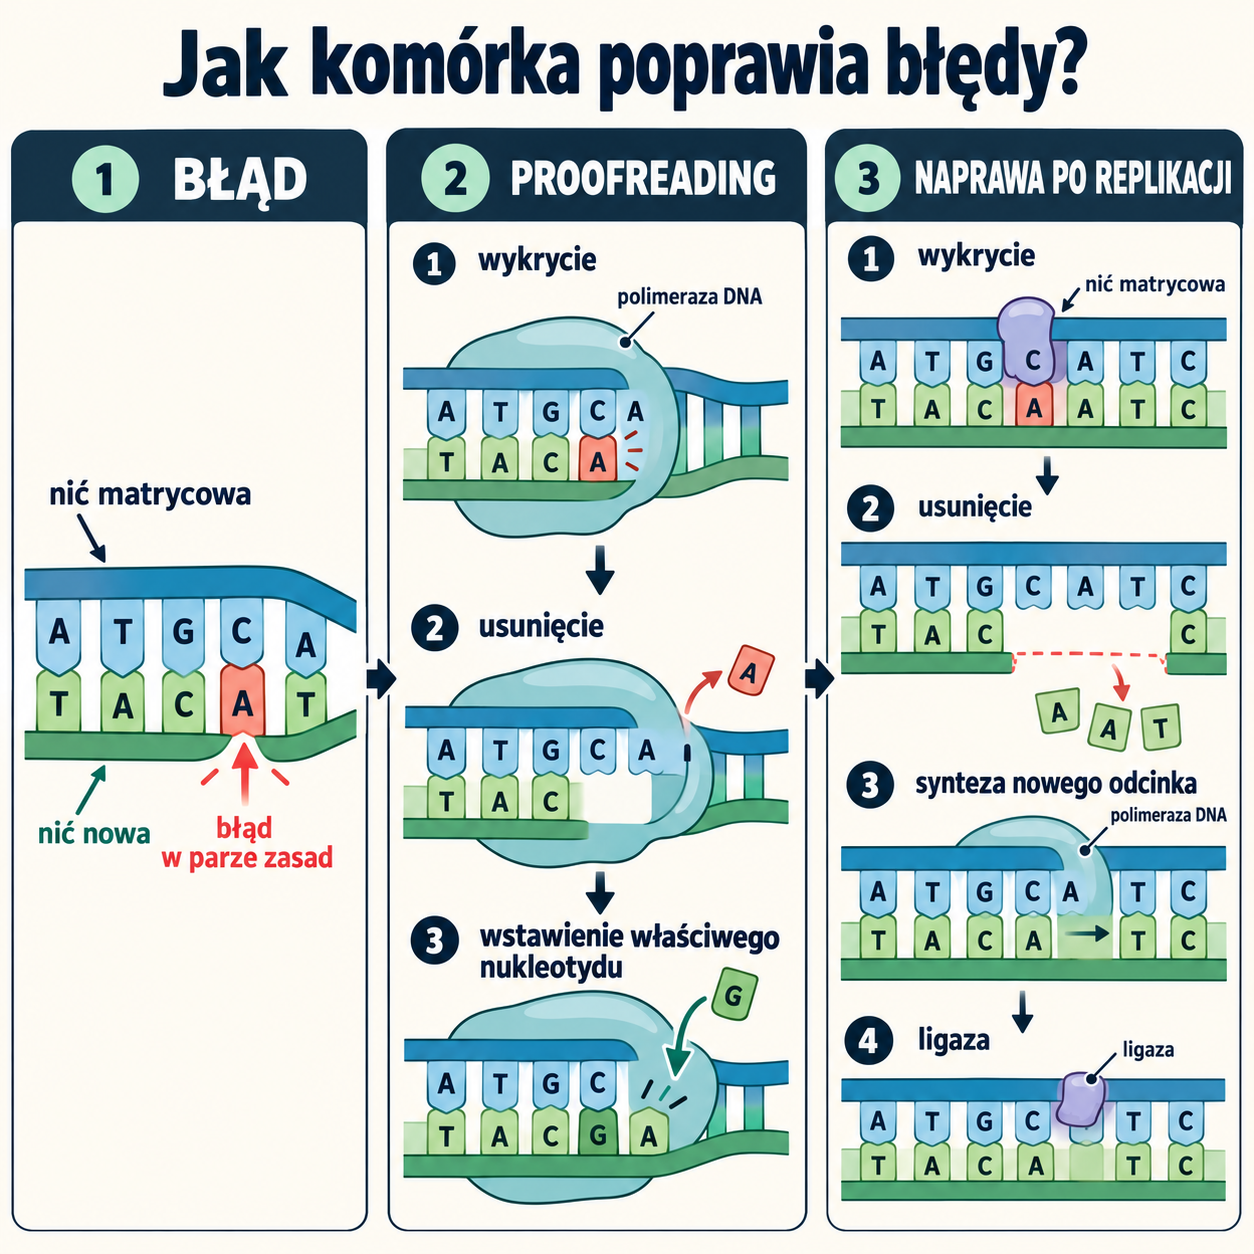
Wiele polimeraz DNA ma zdolność proofreadingu, czyli sprawdzania nowo utworzonej nici.
Jeżeli zostanie dołączony niewłaściwy nukleotyd, geometria końca nowej nici ulega zaburzeniu. Polimeraza może się zatrzymać, cofnąć i usunąć nieprawidłowy nukleotyd dzięki aktywności egzonukleazowej.
Następnie w jego miejsce zostaje wstawiony właściwy nukleotyd, a synteza jest kontynuowana.
Można porównać to do pisania tekstu z jednoczesnym używaniem klawisza „cofnij”. Pomyłka jest rozpoznawana i poprawiana, zanim enzym przejdzie dalej.
Naprawa błędnie sparowanych zasad
Nie wszystkie pomyłki zostają wykryte podczas syntezy.
Po replikacji działa między innymi system naprawy niedopasowanych zasad, określany jako mismatch repair. Rozpoznaje on miejsca, w których zasady nie tworzą prawidłowej pary.
Fragment nowo powstałej nici zawierający błąd zostaje usunięty. Następnie polimeraza uzupełnia lukę na podstawie nici matrycowej, a ligaza zamyka przerwę w szkielecie DNA.
Dzięki połączeniu:
- selektywności polimerazy,
- proofreadingu,
- poreplikacyjnych systemów naprawczych
ostateczna liczba utrwalonych błędów jest niezwykle mała. Szacunkowo po wszystkich etapach kontroli może pozostawać około jednej zmiany na miliard lub nawet więcej prawidłowo skopiowanych nukleotydów, choć dokładność zależy od organizmu, rodzaju komórki i badanego fragmentu DNA.
Skoro kopiowanie jest tak dokładne, skąd biorą się mutacje?
Systemy kontrolne są bardzo skuteczne, ale nie są doskonałe. Część błędów może uniknąć naprawy i zostać utrwalona w DNA.
Mutacje mogą powstawać również pod wpływem:
- promieniowania UV,
- promieniowania jonizującego,
- reaktywnych form tlenu,
- niektórych substancji chemicznych,
- spontanicznych zmian chemicznych zasad azotowych,
- błędów rekombinacji i naprawy DNA.
Nie każda mutacja jest szkodliwa. Wiele zmian zachodzi w sekwencjach, w których nie powoduje zauważalnego efektu. Niektóre wpływają na funkcjonowanie komórki, a nieliczne mogą okazać się korzystne w określonych warunkach.
Mutacje są źródłem nowych alleli i stanowią podstawę zmienności genetycznej, na której może działać dobór naturalny.
Problem kopiowania końców chromosomów
Chromosomy eukariotyczne mają liniową budowę. Na końcu nici opóźnionej po usunięciu ostatniego startera RNA może zabraknąć miejsca, od którego polimeraza rozpoczęłaby uzupełnianie luki.
Powoduje to stopniowe skracanie końców chromosomów podczas kolejnych rund replikacji.
Końce chromosomów są chronione przez telomery – odcinki zbudowane z powtarzających się sekwencji DNA i związanych z nimi białek.
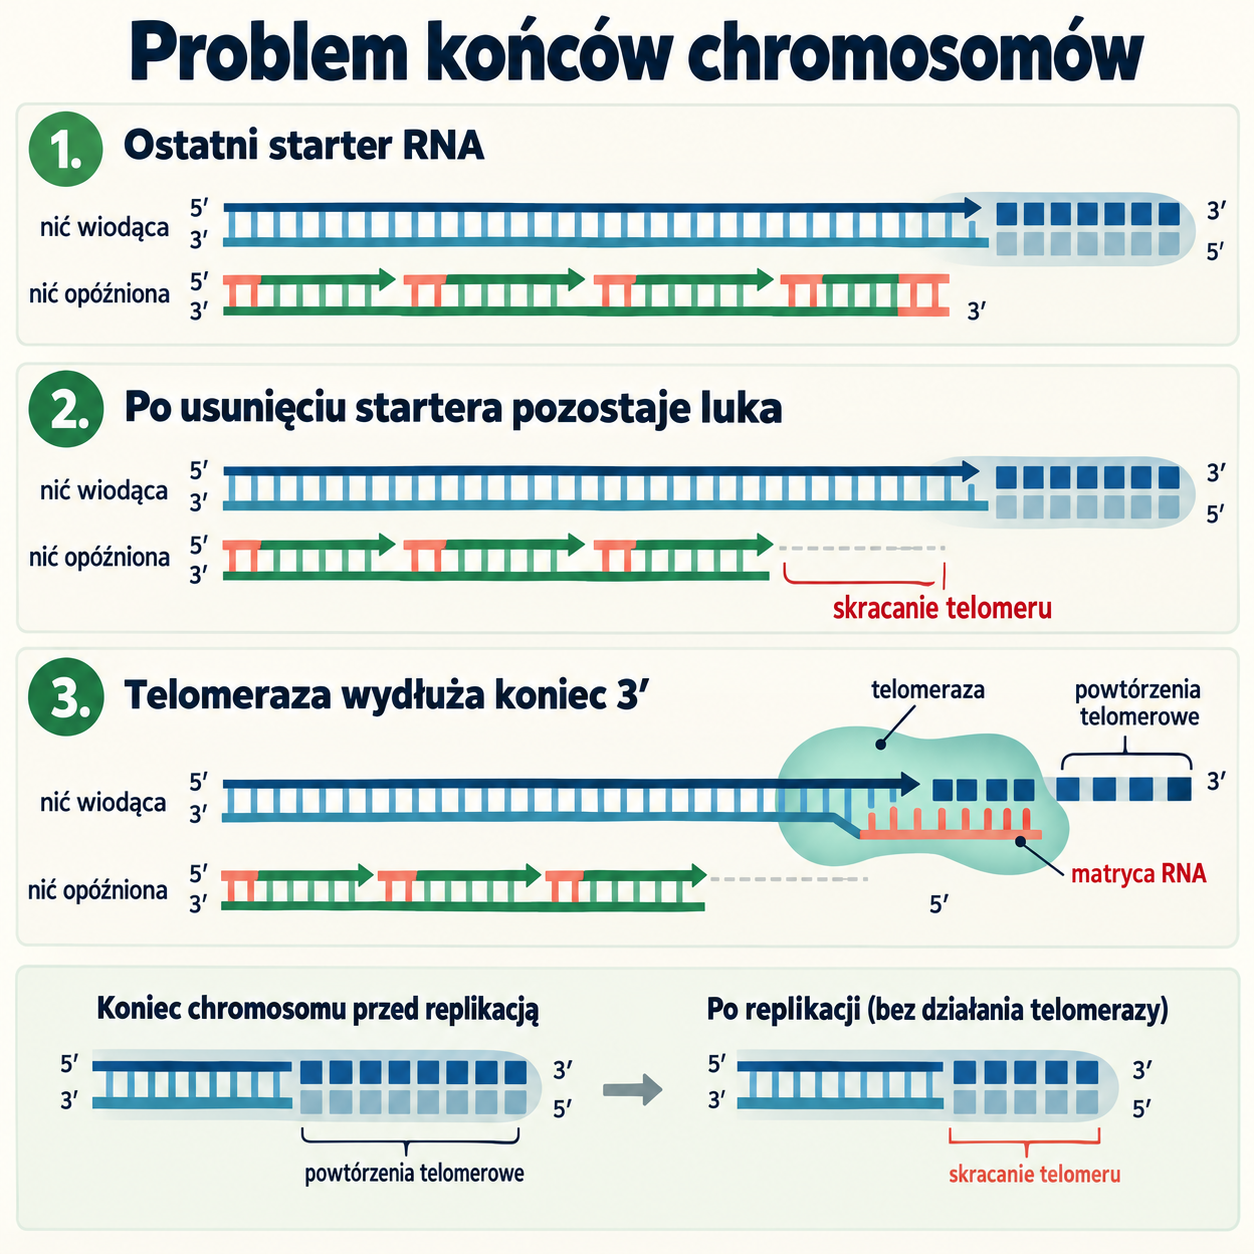
W niektórych komórkach działa telomeraza. Enzym ten wydłuża telomery, wykorzystując własną cząsteczkę RNA jako matrycę.
Telomeraza jest aktywna między innymi:
- w części komórek macierzystych,
- w komórkach linii płciowej,
- w wielu komórkach nowotworowych.
Większość dojrzałych komórek somatycznych ma niewielką aktywność telomerazy, dlatego ich telomery stopniowo się skracają.
Dlaczego eukarionty potrzebują wielu miejsc inicjacji?
Polimerazy DNA przesuwają się wzdłuż matrycy szybko, ale pojedynczy ludzki chromosom może zawierać setki milionów par zasad.
Eukariotyczna komórka uruchamia więc replikację w wielu miejscach jednocześnie. Każde miejsce inicjacji tworzy własne oczko replikacyjne, a kopiowanie przebiega dwukierunkowo.
Oczka stopniowo się powiększają, aż spotykają się z sąsiednimi. Dzięki temu cały genom może zostać skopiowany w ciągu kilku godzin.
Komórka musi przy tym ściśle kontrolować, aby każdy fragment DNA został skopiowany dokładnie raz – nie został pominięty ani powielony kilkukrotnie.
Miejsca inicjacji są przygotowywane do replikacji przed fazą S, ale mogą zostać uruchomione tylko raz w danym cyklu komórkowym. Mechanizmy kontroli cyklu zapobiegają ponownemu rozpoczęciu kopiowania już zreplikowanego obszaru.
Replikacja DNA u bakterii
Podstawowe zasady replikacji są podobne u bakterii i eukariontów:
- nici DNA są rozdzielane,
- synteza wymaga startera,
- polimeraza pracuje w kierunku 5′ → 3′,
- powstają nić wiodąca i opóźniona,
- występują fragmenty Okazaki,
- proces ma charakter semikonserwatywny.
Istnieją jednak różnice organizacyjne.
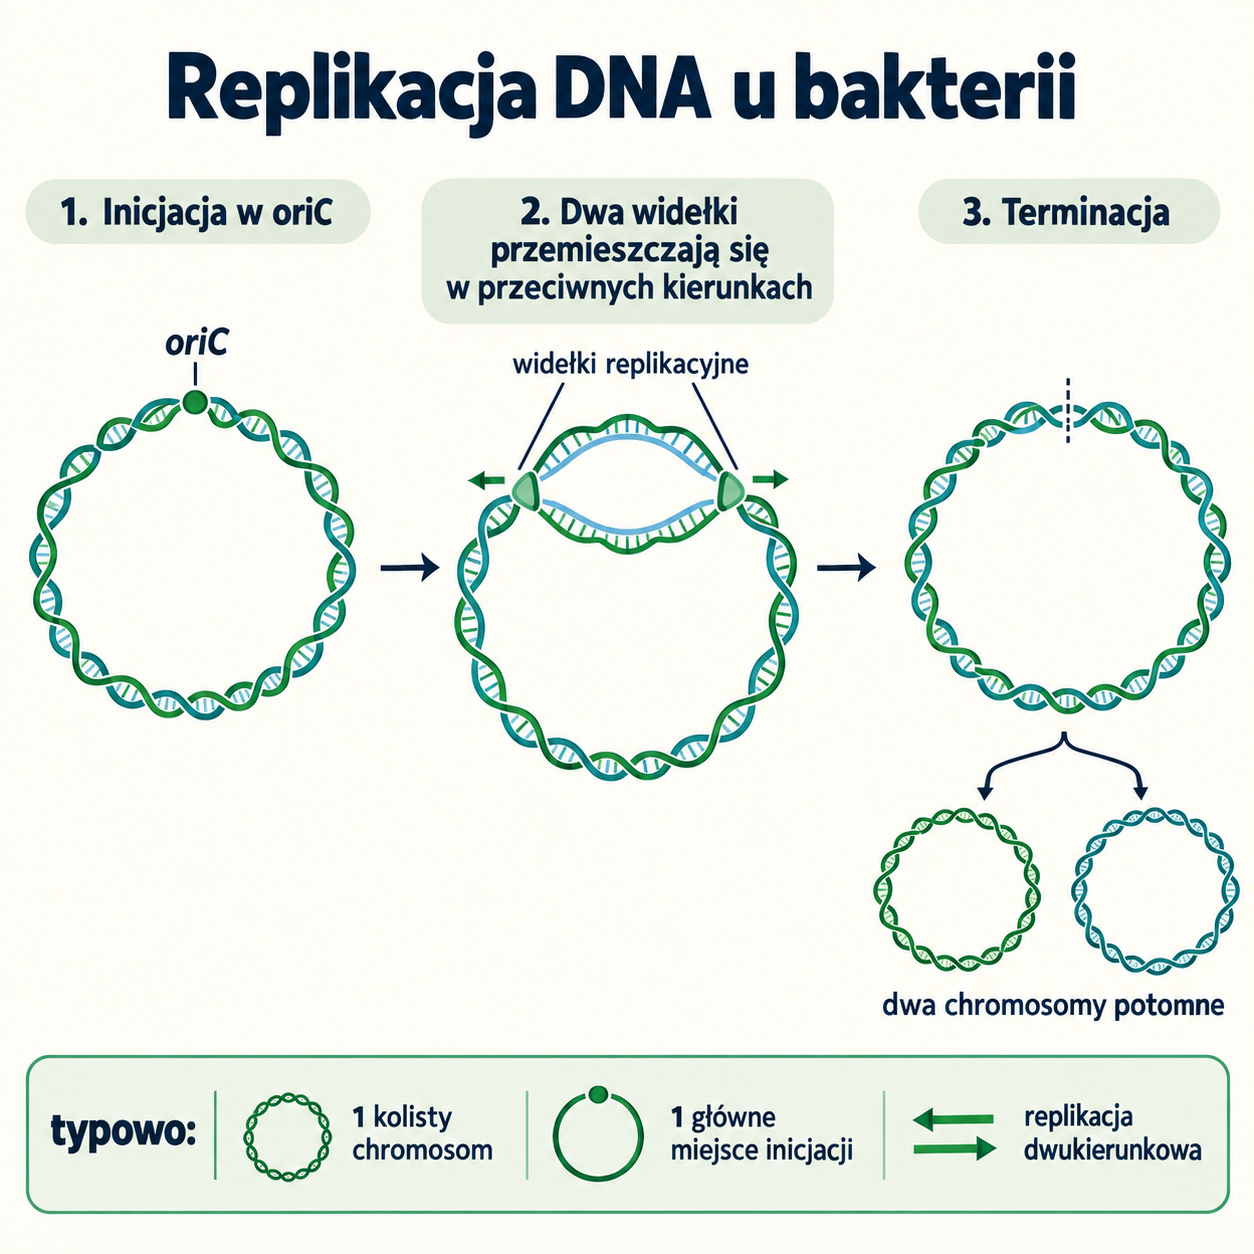
Typowy chromosom bakteryjny jest kolisty i ma jedno główne miejsce inicjacji replikacji. Dwa aparaty replikacyjne przesuwają się w przeciwnych kierunkach wokół cząsteczki, aż spotkają się w obszarze terminacji.
Chromosomy eukariotyczne są liniowe, znacznie dłuższe i mają liczne miejsca inicjacji. Ich kopiowanie zachodzi w jądrze i jest dodatkowo powiązane z odtwarzaniem struktury chromatyny.
Co dzieje się z histonami podczas replikacji?
DNA w jądrze nie występuje w postaci nagiej nici. Jest owinięty wokół histonów i zorganizowany w nukleosomy.
Przed aparatem replikacyjnym struktura chromatyny musi zostać czasowo rozluźniona. Część istniejących histonów zostaje rozdzielona pomiędzy cząsteczki potomne, a brakujące białka histonowe są syntetyzowane i dołączane do nowego DNA.
Po przejściu widełek replikacyjnych nukleosomy są odtwarzane. Dzięki temu nowo powstałe cząsteczki DNA zostają ponownie właściwie upakowane.
Replikacja obejmuje więc nie tylko skopiowanie sekwencji nukleotydów, lecz także odbudowę organizacji chromatyny.
Czy każda komórka nieustannie kopiuje DNA?
Nie. Replikacja jądrowego DNA zachodzi podczas fazy S cyklu komórkowego i jest związana z przygotowaniem do podziału.
Komórki, które przestały się dzielić i znajdują się w fazie G₀, nie kopiują całego genomu przed kolejnym podziałem, ponieważ do takiego podziału nie przystępują.
Nie oznacza to jednak, że ich DNA pozostaje całkowicie nieaktywne. Nadal może być odczytywane i naprawiane.
Replikacji nie należy mylić z transkrypcją:
- podczas replikacji kopiowany jest cały DNA przed podziałem,
- podczas transkrypcji wybrany fragment DNA jest przepisywany na RNA.
Replikacja, transkrypcja i translacja – trzy różne procesy
| Proces | Matryca | Produkt | Główny cel |
|---|---|---|---|
| Replikacja | DNA | DNA | Skopiowanie materiału genetycznego |
| Transkrypcja | DNA | RNA | Przepisanie informacji z wybranego genu |
| Translacja | mRNA | Białko | Odczytanie informacji i synteza białka |
Replikacja nie prowadzi bezpośrednio do powstania białka. Jej zadaniem jest przygotowanie pełnej kopii materiału genetycznego dla komórki potomnej.
Jak komórka kopiuje miliardy liter i prawie się nie myli?
Wysoka dokładność replikacji nie wynika z działania jednego idealnego enzymu. Jest efektem współpracy wielu mechanizmów:
- zasady komplementarności,
- przestrzennego dopasowania nukleotydów w polimerazie,
- proofreadingu podczas syntezy,
- naprawy błędów po replikacji,
- kontroli miejsc rozpoczęcia i zakończenia kopiowania,
- działania punktów kontrolnych cyklu komórkowego.
Każdy poziom usuwa część błędów, które przeszły przez wcześniejszą kontrolę. Dzięki temu ogromny genom może być kopiowany z dokładnością wystarczającą do zachowania ciągłości życia, ale nie absolutną.
Ta niewielka niedoskonałość ma podwójne znaczenie. Może prowadzić do chorób i zaburzeń funkcjonowania komórek, lecz jednocześnie dostarcza zmienności potrzebnej do ewolucji.
Replikacja DNA w pigułce
- Replikacja DNA zachodzi w fazie S interfazy.
- Jest procesem semikonserwatywnym – każda cząsteczka potomna zawiera jedną nić starą i jedną nową.
- Rozpoczyna się w miejscach inicjacji i przebiega dwukierunkowo.
- Helikaza rozdziela nici DNA, rozrywając wiązania wodorowe.
- Białka wiążące jednoniciowy DNA stabilizują rozdzielone nici.
- Topoizomeraza usuwa naprężenia powstające przed widełkami replikacyjnymi.
- Prymaza syntetyzuje startery RNA.
- Polimeraza DNA wydłuża nowe nici wyłącznie w kierunku 5′ → 3′.
- Nić wiodąca powstaje ciągle.
- Nić opóźniona powstaje w postaci fragmentów Okazaki.
- Ligaza tworzy wiązania fosfodiestrowe pomiędzy sąsiednimi fragmentami.
- Proofreading i systemy naprawcze znacznie zmniejszają liczbę utrwalonych błędów.
- Telomery chronią końce liniowych chromosomów, a telomeraza może je wydłużać.
- Replikacja kopiuje DNA, transkrypcja prowadzi do powstania RNA, a translacja – białka.
Sprawdź, czy rozumiesz
- Dlaczego każda nić DNA może posłużyć jako matryca?
- Co oznacza, że replikacja jest semikonserwatywna?
- Dlaczego eukariotyczne chromosomy mają wiele miejsc inicjacji replikacji?
- Jakie funkcje pełnią helikaza, topoizomeraza i białka wiążące jednoniciowy DNA?
- Dlaczego polimeraza DNA potrzebuje startera?
- W jakim kierunku powstają wszystkie nowe nici DNA?
- Czym różni się synteza nici wiodącej od syntezy nici opóźnionej?
- Kiedy i dlaczego powstają fragmenty Okazaki?
- Jaką funkcję pełni ligaza DNA?
- Na czym polega proofreading?
- Dlaczego po replikacji nadal mogą pozostawać nieliczne błędy?
- Na czym polega problem kopiowania końców liniowych chromosomów?
- Czym replikacja różni się od transkrypcji?
- Dlaczego niewielka niedoskonałość replikacji ma znaczenie ewolucyjne?
Co dalej?
Skopiowanie DNA nie oznacza jeszcze, że komórka wykorzysta całą zapisaną w nim informację. Większość genów pozostaje w danym momencie nieaktywna, a odczytywane są tylko te, których produktów komórka rzeczywiście potrzebuje. W kolejnym artykule prześledzimy transkrypcję i zobaczymy, w jaki sposób fragment informacji zapisanej w DNA zostaje przepisany na RNA.
CZYTAJ DALEJ
Powiązane artykuły
POTRZEBUJESZ WSPARCIA?
Nie uczę zapamiętywać biologii i chemii. Uczę je rozumieć.
Podczas indywidualnych zajęć możemy spokojnie uporządkować ten temat i przećwiczyć go na zadaniach.
Zobacz korepetycje